活動電位(Action Potential)とは、ニューロンの膜の電位が1000分の数秒だけプラスへ大きく振れる、大きさの決まった電気の信号です。軸索の上でつくり直されながら、弱まらずに遠くまで届きます。
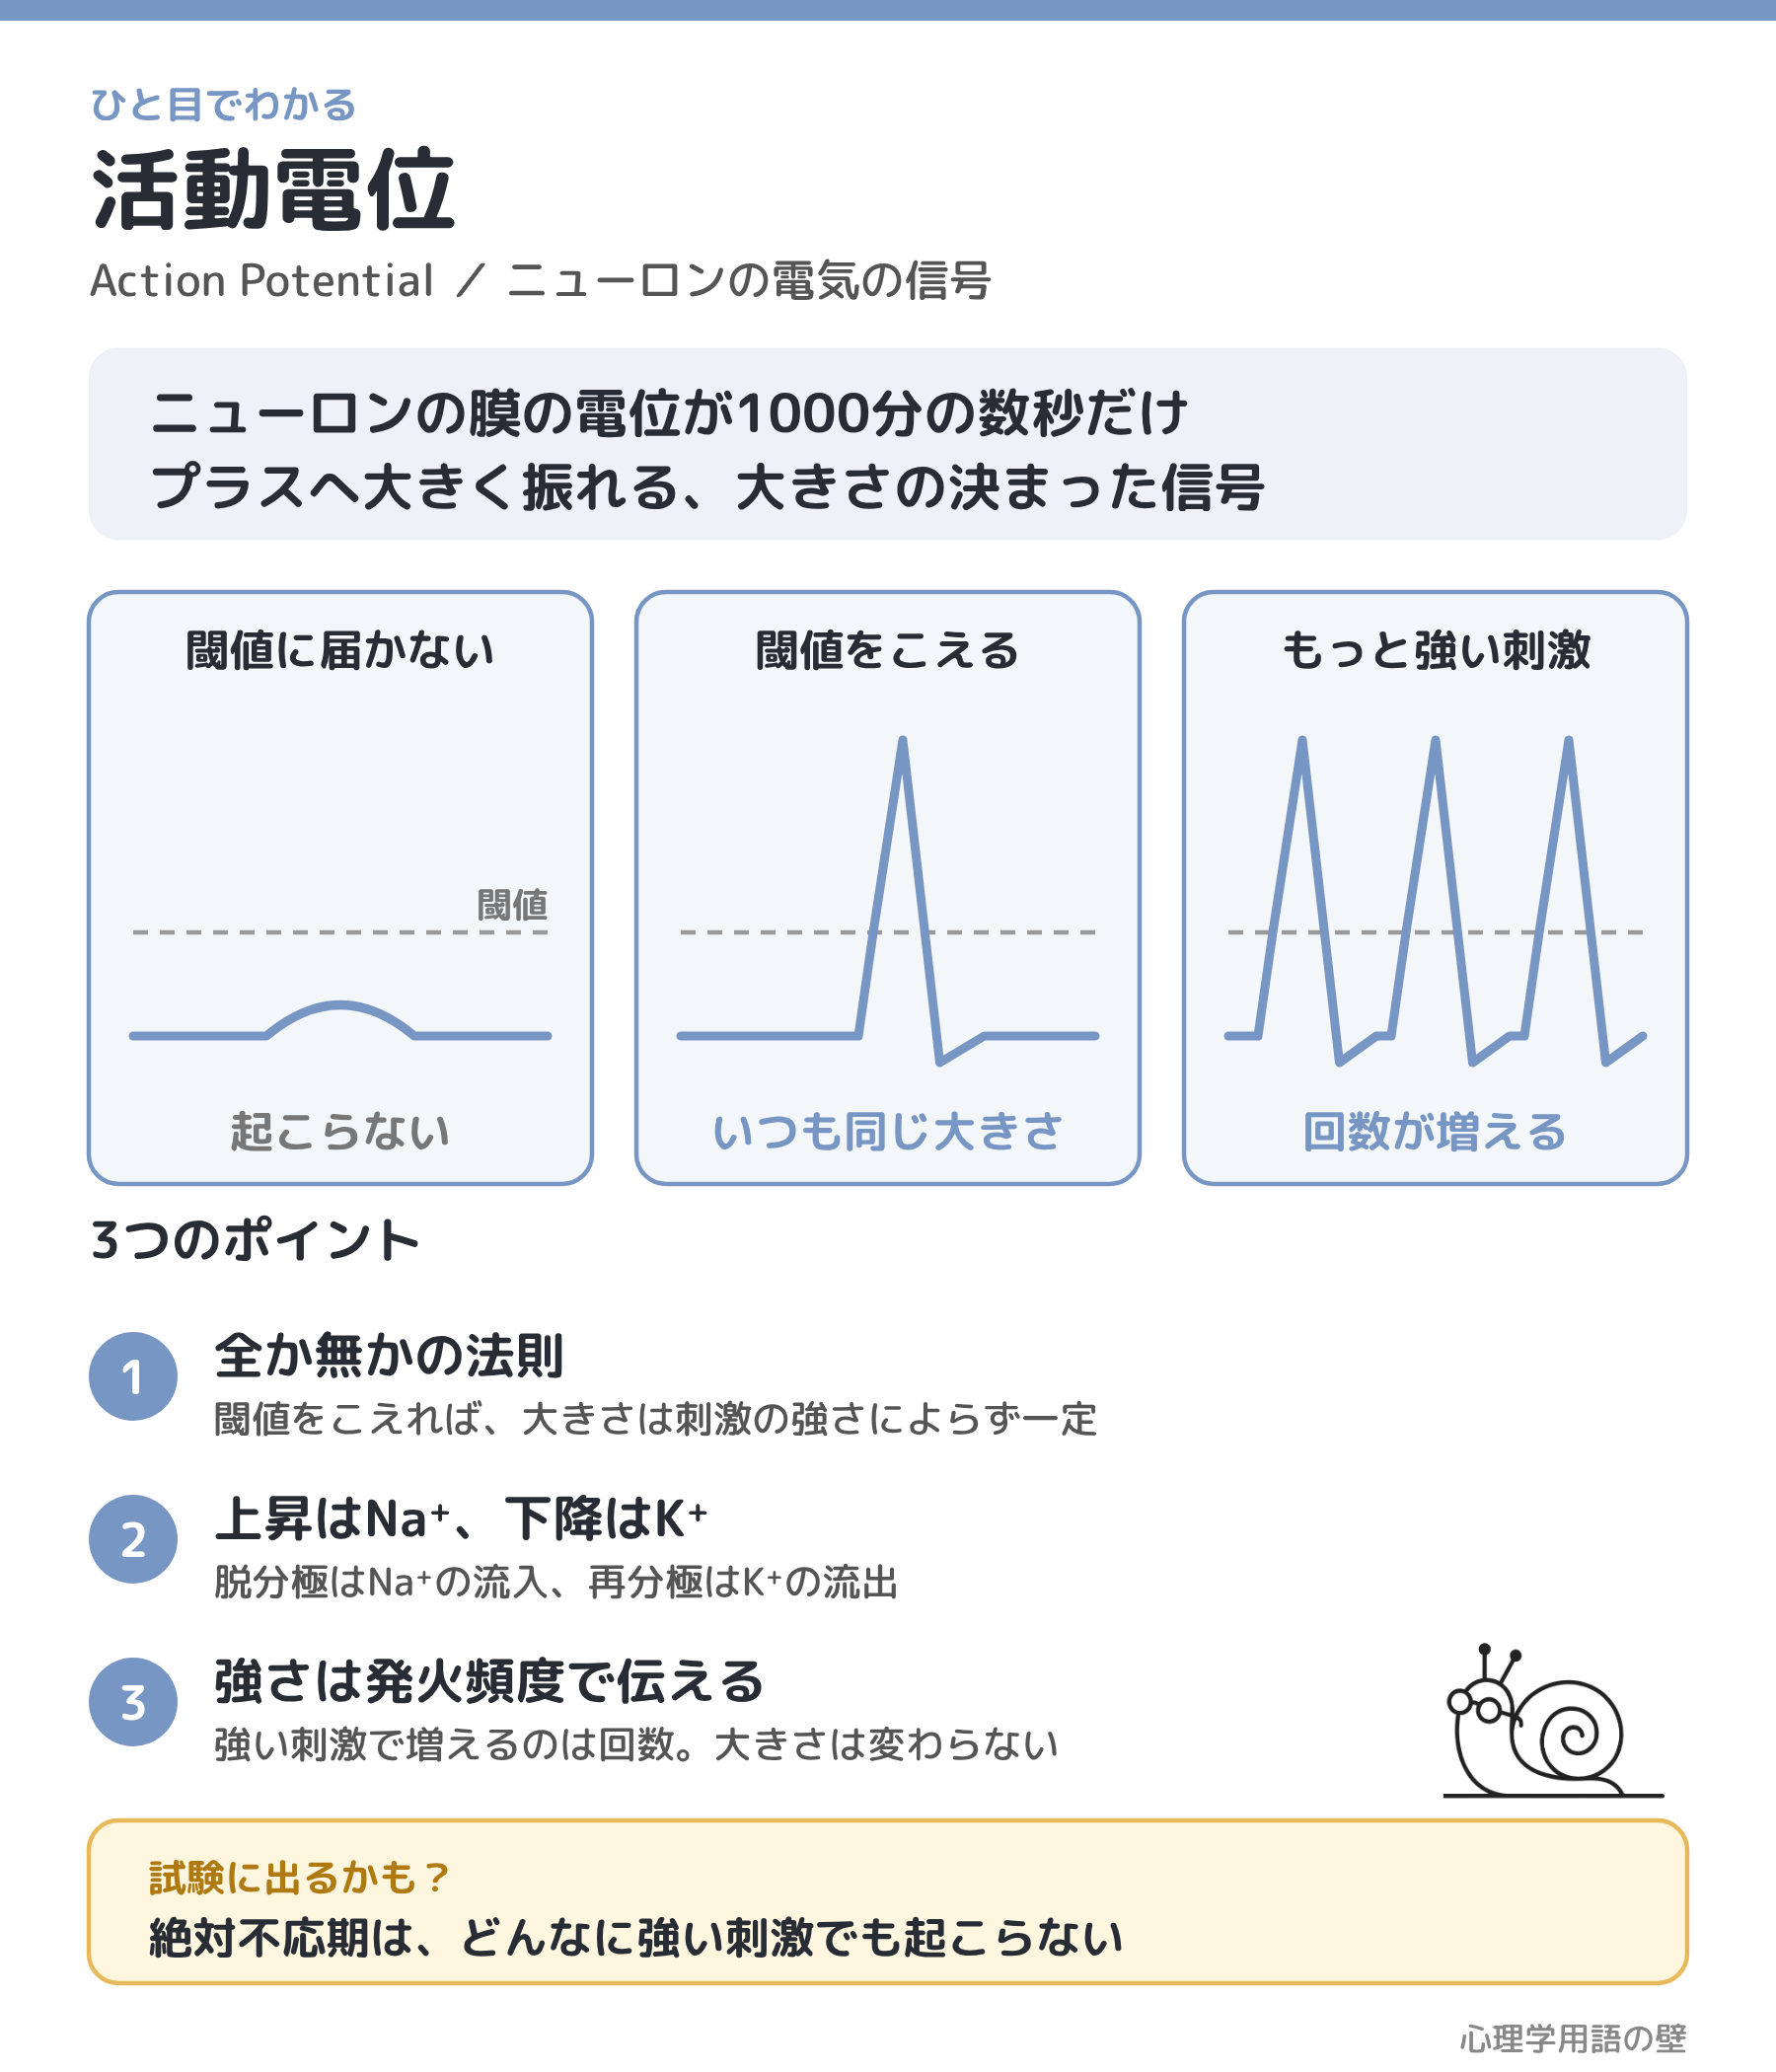
簡単な説明
日本庭園の「ししおどし」を思い浮かべてください。竹筒に水がたまり、ある量をこえたとたん倒れて「カーン」と鳴ります。たりなければ何も起こらず、こえれば毎回同じ音です。鳴ったあとは、筒が戻って水がたまり直すまで次は鳴りません。
ニューロンも同じです。膜の電位がある値(閾値)をこえると、いつも同じ大きさの活動電位が起こり、直後には次が起こりにくい「休み時間」(不応期)があります。水の勢いが強いほど「カーン」の間隔が短くなるように、強い刺激は鳴る回数を増やして伝えます。
由来
しくみを明らかにしたのは、イギリスのAlan L. HodgkinとAndrew F. Huxleyです。HodgkinはBernard Katzとヤリイカの巨大神経線維でナトリウム説を確かめ(1949年)、続いてHuxleyと、膜の電位を一定に保って電流を測る電位固定法で解析しました。1952年の5本の論文(The Journal of Physiology)の最後の式がHodgkin–Huxleyモデルです。
2人は1963年、John C. Ecclesとともにノーベル生理学・医学賞を受けました。1939年に線維の内側から活動電位を記録した実験は、ニューロン(Neuron)の記事で紹介しています。
具体的な説明
静止膜電位と平衡電位
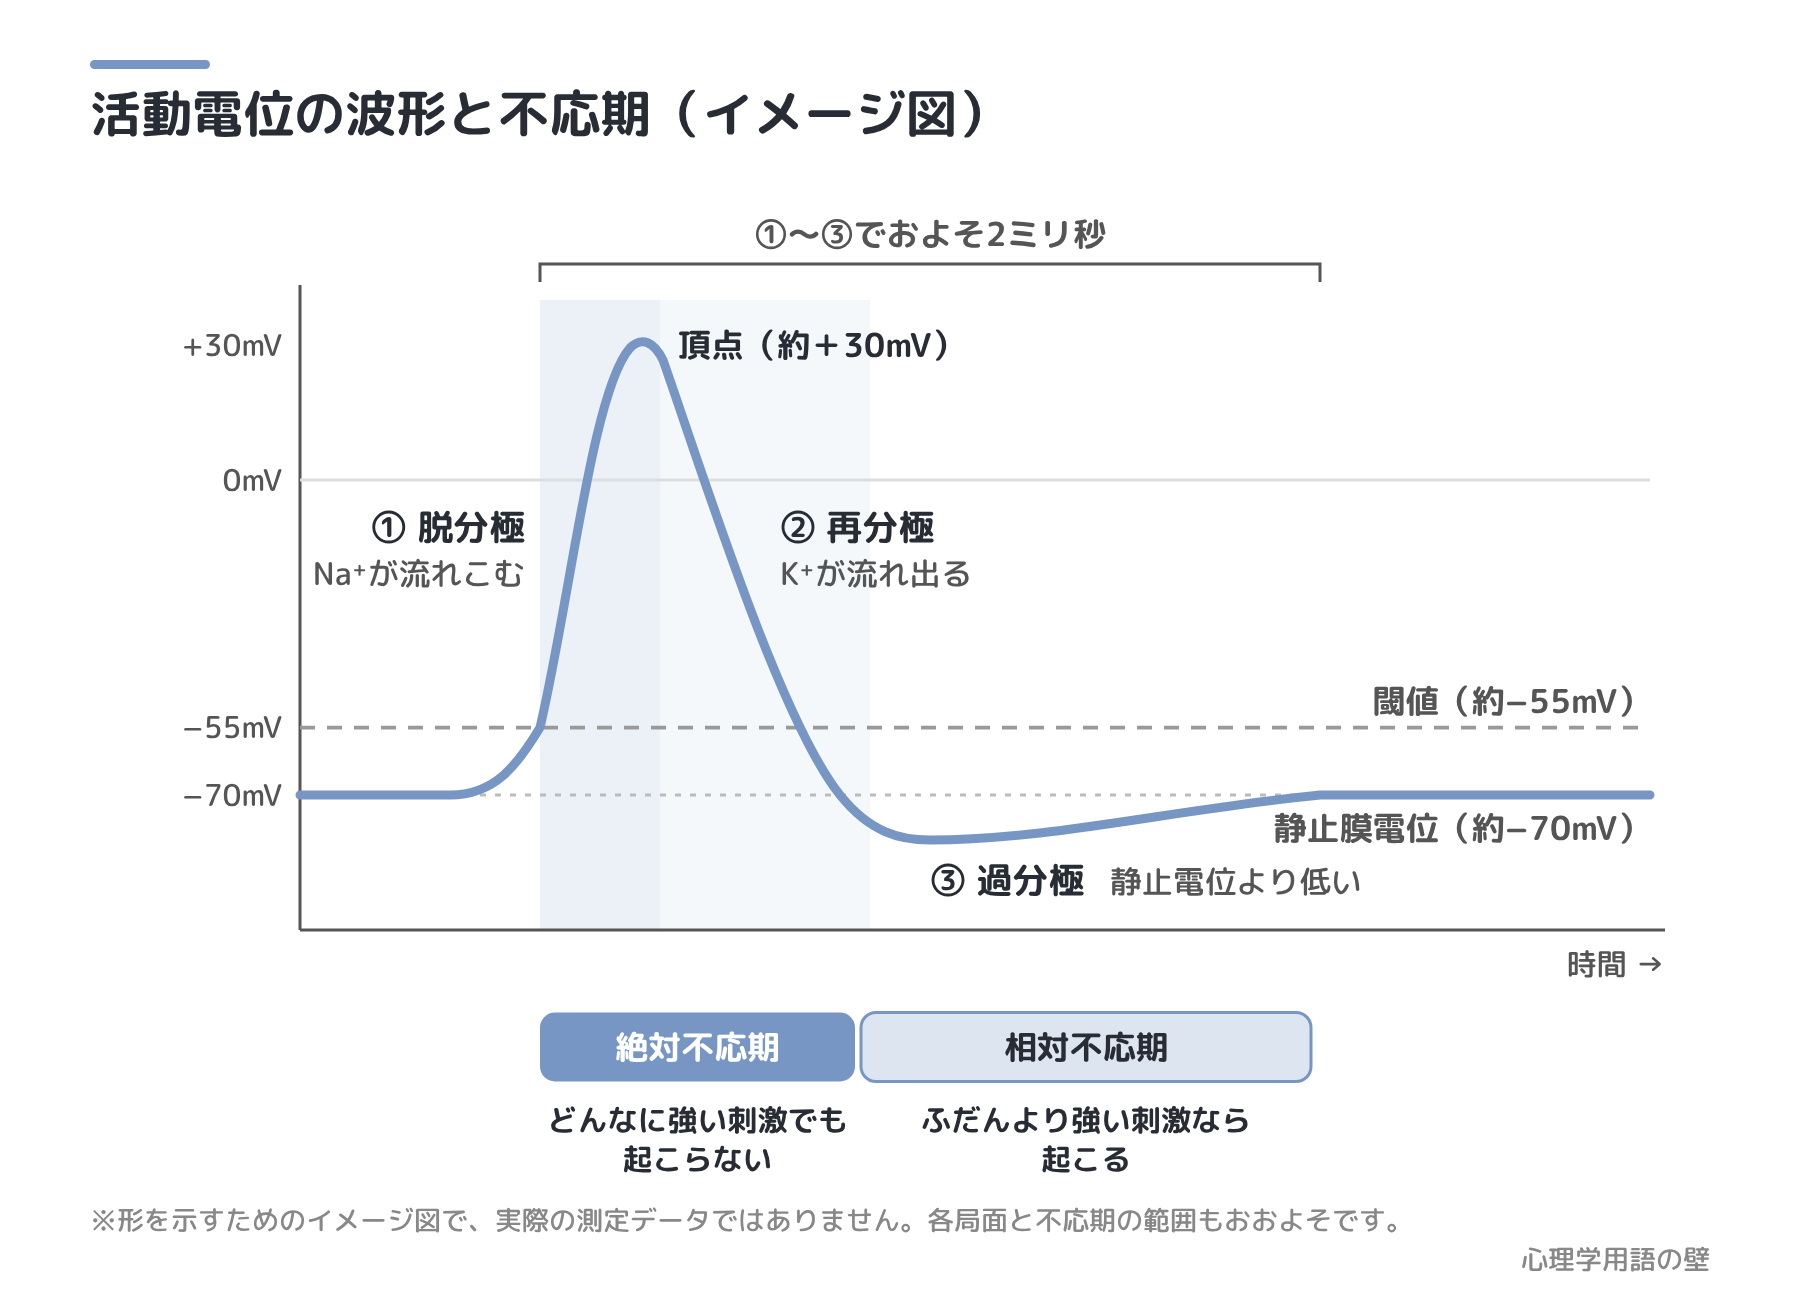
信号を出していないとき、細胞の内側は外側に対して約−70mVで、これを静止膜電位といいます(値は細胞により異なります)。中にはK⁺が多く、外にはNa⁺が多い(約10倍)というかたよりがあり、静止時の膜は主にK⁺を通します。
1種類のイオンだけを通す膜では、出入りがつり合う電位(平衡電位)が濃度差からネルンストの式で決まります。Hodgkinのノーベル賞講演の例では、K⁺が内400mM・外20mMで約−75mV、Na⁺の10倍の濃度差で最大約+58mVです。静止時はK⁺の、興奮時はNa⁺の平衡電位に近づくと考えると全体がつながります。
活動電位の流れとチャネルの動き
| 局面 | 電位依存性Na⁺チャネル | 電位依存性K⁺チャネル | 膜電位(教科書の目安) |
|---|---|---|---|
| 脱分極 | 閾値で一斉に開き、Na⁺が流れこむ | 遅れて開きはじめる | 約−55mVから頂点の約+30mVへ |
| 再分極 | 不活性化ゲートが閉じ、Na⁺が止まる | 開いてK⁺が流れ出る | 静止電位へ戻る |
| 過分極 | 元の状態へ戻っていく | 開いたままで行きすぎる | 静止電位より低い |
ここまでがおよそ2ミリ秒です。閾値に届けば多数のNa⁺チャネルが開き、頂点まで進みます。
絶対不応期と相対不応期
| 次の活動電位 | 主な原因 | |
|---|---|---|
| 絶対不応期 | どんなに強い刺激でも起こらない | Na⁺チャネルの不活性化 |
| 相対不応期 | ふだんより強い刺激なら起こる | K⁺の流出が続いている |
通りすぎた部分は絶対不応期にあるので、信号は来た方向へ戻らず、軸索の終末へ一方向に進みます。
全か無かの法則と頻度コード
閾値に届かなければ活動電位は起こらず、届けば大きさは刺激の強さによらず一定です。これを全か無かの法則といい、E. D. Adrianが1914年に神経で論じました。では、強さはどう伝わるのでしょうか。
AdrianはYngve Zottermanと、カエルの筋を感覚器が1つだけ残るまで細く分けて1本の感覚線維を記録しました(1926年)。ノーベル賞講演(1932年)では、筋紡錘を引きのばすと大きさのそろったインパルスが毎秒約10回から50回以上へ増える例を挙げ、強さは1本の線維の発火頻度と活動する線維の数で表されると述べています。前者が頻度コード(レートコード)です。強い刺激で増えるのは頻度で、大きさや伝導速度は変わりません。
伝導速度と跳躍伝導
伝導速度を左右する主な要因は、軸索の太さと髄鞘の有無です。Hodgkinによれば、太いほど速いのは、中心部の電気の通りやすさが直径の2乗で増えるのに、膜の電気容量は直径に比例してしか増えないためです。
脊椎動物では、グリア細胞がつくる髄鞘が軸索を包んでいます。興奮できる膜は髄鞘のすき間のランビエ絞輪だけに出ていて、活動電位は絞輪から絞輪へ跳ぶように伝わります(跳躍伝導。Ichiji Tasaki〈1939〉が実証)。1回に入るNa⁺も少なくてすみます。髄鞘がこわれる多発性硬化症では、信号が遅くなります。
シナプス後電位(段階的電位)との違い
| 活動電位 | シナプス後電位(EPSP・IPSP) | |
|---|---|---|
| 大きさ | 一定(全か無か) | 入力の強さで変わる(段階的) |
| 向き | 脱分極 | EPSPは脱分極、IPSPは過分極 |
| 足し合わせ | しない(不応期がある) | 時間的・空間的に加重する |
| 広がり | 減衰せず遠くまで伝わる | その場の局所的な変化 |
シナプス後電位が加重され、軸索小丘(軸索の起始部)で閾値をこえると活動電位が生まれます。受け手側のしくみはシナプス(Synapse)の記事で解説しています。
実験や観察の方法と結論
背景 活動電位の頂点で膜電位がプラスになることは、膜が一時的にあらゆるイオンを通すというBernsteinの説では説明できませんでした。
方法 1947年夏、HodgkinとKatzは外液の塩化ナトリウムを塩化コリンやブドウ糖に置きかえてNa⁺を減らし、Na⁺を増やした液も試しました。HodgkinとHuxleyは電位固定法で、Na⁺を減らした記録と比べて電流をNa⁺とK⁺の分に分けました。
結果 Na⁺を減らすと静止膜電位は変わらず活動電位が小さくなり、すべて除くと可逆的に興奮しなくなりました。Na⁺を増やすとプラスへの行きすぎ(オーバーシュート)が大きくなりました。電位固定では、Na⁺の通りやすさが速く高まってから下がり、K⁺は遅れて高まりました。
結論 上昇はNa⁺の流入、下降はK⁺の流出によるというナトリウム説が裏づけられました。
例文
「外液のNa⁺を減らすと、静止膜電位はほぼそのままで、活動電位の振幅が小さくなります。」
「絶対不応期には、どれほど強い刺激でも次の活動電位は生じません。」
疑問
Q: 活動電位のたびにNa⁺が入るなら、そのうち細胞の中がNa⁺だらけになりませんか?
A: なりません。1回で動くイオンはごくわずかで、Hodgkinによれば直径約0.5mmの巨大線維が1回で失うK⁺は内部の100万分の1ほどです。濃度差は、エネルギーを使うナトリウム-カリウムポンプが保っています。
Q: 信号が軸索を伝わるとき、だんだん弱くならないのですか?
A: 弱くなりません。活動電位は隣の膜を閾値までもち上げ、そこで同じ大きさの活動電位がつくり直されます。リレーのように毎回つくり直されるので、減衰せずに届きます。
Q: 刺激の強さは、頻度だけで伝わるのですか?
A: 頻度だけではありません。Adrianは、血圧が上がると頸動脈洞からの線維1本ごとの頻度が上がり、活動する線維の数も増えるというBronkとStellaの例を挙げています。
理解度を確認する問題
問題1. 活動電位の不応期に関する記述として、最も適切なものはどれか。
- A. 絶対不応期でも、十分に強い刺激なら活動電位が生じる
- B. 相対不応期は、Na⁺チャネルの不活性化だけで説明される
- C. 絶対不応期はNa⁺チャネルの不活性化によって生じ、そのため活動電位は来た方向へ戻らない
- D. 相対不応期には、ふだんと同じ刺激で、より大きな活動電位が生じる
正解:C 通りすぎた部分は不活性化で再び興奮しないので、信号は一方向に進みます。Aは「強ければ起こる」相対不応期との混同です。Bは、相対不応期にはK⁺の流出も関わるので「だけ」が誤りです。Dは、必要なのはふだんより強い刺激で、振幅も大きくなりません。
問題2. ヤリイカの巨大神経線維で、外液のNa⁺濃度を下げる実験を行った。結果として、最も適切なものはどれか。
- A. 静止膜電位はほとんど変わらず、活動電位の振幅が小さくなる
- B. 静止膜電位が大きく変わり、活動電位はまったく生じなくなる
- C. 全か無かの法則により振幅は変わらず、発火の頻度だけが下がる
- D. Na⁺をすべて除くと、海水に戻しても線維は二度と興奮しなくなる
正解:A HodgkinとKatzの実験です。静止膜電位は主にK⁺で決まるので変わらず、上昇はNa⁺の流入によるので振幅が小さくなります。Bは静止膜電位がNa⁺で決まるとする誤りです。Cはまぎらわしいですが、全か無かの法則は「刺激の強さで大きさが変わらない」という意味で、イオン濃度が変われば振幅は変わります。Dは誤りで、変化は可逆的でした。
問題3. 活動電位とシナプス後電位(EPSP・IPSP)を比べた記述として、最も適切なものはどれか。
- A. シナプス後電位は全か無かの法則に従い、大きさが一定である
- B. 活動電位は時間的加重によって、1つずつの振幅が大きくなる
- C. シナプス後電位は段階的で、加重された結果が軸索小丘で閾値をこえると活動電位が生じる
- D. IPSPも脱分極なので、加重されると活動電位を起こしやすくする
正解:C シナプス後電位は段階的で、加重されて閾値をこえると活動電位が生まれます。Aは活動電位の性質です。Bは誤りで、加重するのはシナプス後電位です。Dは誤りで、IPSPは過分極で膜電位を閾値から遠ざけます。
関連キーワード
- ニューロン(Neuron)
- シナプス(Synapse)
- グリア細胞(Glial Cell)
- 神経伝達物質(Neurotransmitter)
- 静止膜電位(Resting Membrane Potential)
- 全か無かの法則(All-or-None Law)
- 不応期(Refractory Period)
- 跳躍伝導(Saltatory Conduction)
関連論文
まずこの1本
Hodgkin, A. L., & Katz, B.(1949)The effect of sodium ions on the electrical activity of the giant axon of the squid. The Journal of Physiology, 108(1), 37–77.
外液のNa⁺を増減させ、活動電位の上昇がNa⁺の流入によるというナトリウム説を確かめた論文です(2つめのURLはHodgkinのノーベル賞講演)。試験では静止膜電位=主にK⁺、脱分極=Na⁺流入、再分極=K⁺流出の対応と、「外液のNa⁺を変えると振幅は変わり、静止膜電位は変わらない」点を押さえましょう。
https://doi.org/10.1113/jphysiol.1949.sp004310
https://www.nobelprize.org/uploads/2018/06/hodgkin-lecture.pdf
その他の参考文献
Hodgkin, A. L., & Huxley, A. F.(1952)“A quantitative description of membrane current and its application to conduction and excitation in nerve.” The Journal of Physiology, 117(4), 500–544.
概要 電位固定法の結果をNa⁺とK⁺の通りやすさの式にまとめ、活動電位の形・伝導・相対不応期からの回復を計算で再現した論文です。
解説 Huxleyの講演によれば、伝わる活動電位の計算は手作業で数週間かかりました。
https://doi.org/10.1113/jphysiol.1952.sp004764ほそめがねのひとこと
絶対不応期と相対不応期のちがいは覚えにくかったですか?
覚え方
①流れ:「ナ入り、カ出て、行きすぎる」。脱分極はNa⁺流入、再分極はK⁺流出、最後に過分極です。
②全か無かと頻度:「ししおどしは音量一定、強さは回数」。
③不応期:「絶対はムリ、相対は強ければOK」。絶対はNa⁺チャネルの休み中です。
④由来:「イカで固定、ホジキン・ハクスリー」。1952年に式、1963年にノーベル賞です。
コメント